Il taglio netto che crea una reazione difficile
Un frammento di DNA può arrivare alla fase di ligazione apparentemente perfettamente preparato: entrambi i filamenti sono intatti, le estremità sono pulite e la sequenza è esattamente quella richiesta dal flusso di lavoro.
Eppure, la reazione può comunque fallire.
La ragione spesso risiede nella geometria dell'estremità del DNA. Un frammento con estremità piatta termina esattamente in corrispondenza di una coppia di basi. Non c'è alcuna coda a singolo filamento che si estenda oltre il duplex, nessun appaiamento temporaneo delle basi e nessun segnale intrinseco che indichi a un'estremità del DNA come trovare il proprio partner.
Il taglio è netto.
La chimica no.
Questa distinzione è importante nella preparazione di librerie diagnostiche, nello sviluppo di controlli positivi ricombinanti e nella costruzione di vettori. In ciascuna applicazione, l'affidabilità di un test a valle può dipendere dalla capacità di una ligasi di trasformare una collisione molecolare a bassa probabilità in un legame fosfodiesterico stabile.
Cosa significa realmente DNA con estremità piatte
Un'estremità di duplex uniforme
Un'estremità piatta si forma quando entrambi i filamenti di un duplex di DNA terminano nella stessa posizione nucleotidica.
La struttura risultante contiene:
- Un frammento di DNA a doppio filamento privo di sporgenze
- Un gruppo fosfato 5' su un filamento
- Un gruppo ossidrile 3' sul filamento opposto
- Nessun nucleotide non appaiato disponibile per un appaiamento temporaneo delle basi
Strutturalmente è semplice. Funzionalmente non perdona.
Le estremità coesive, al contrario, contengono sporgenze complementari a singolo filamento. Queste sporgenze possono riconoscersi e appaiarsi brevemente prima che l'enzima completi il legame. Le molecole di DNA contribuiscono in pratica a posizionarsi autonomamente.
Le molecole con estremità piatte non ricevono questo aiuto.
L'assenza di guida molecolare
Con le estremità coesive, la complementarità di sequenza crea un certo grado di selettività. Con le estremità piatte, quasi ogni estremità piatta compatibile può potenzialmente unirsi a un'altra.
Questa aspecificità può essere utile. Può anche essere pericolosa.
In una libreria di sequenziamento, l'obiettivo può essere collegare adattatori universali a una popolazione diversificata di frammenti di DNA. L'unione aspecifica è desiderabile perché il flusso di lavoro deve trattare allo stesso modo molte sequenze diverse.
Nella costruzione di plasmidi, tuttavia, l'aspecificità può creare prodotti indesiderati. Gli inserti possono unirsi tra loro, i vettori possono ricircularizzarsi e possono formarsi ripetizioni tandem.
La stessa proprietà fisica può quindi rappresentare un vantaggio in un flusso di lavoro e una fonte di background in un altro.
Perché la ligazione diventa un problema cinetico
La ligazione di estremità piatte non è semplicemente una versione meno pratica della ligazione di estremità coesive. Segue un percorso di reazione più difficile.
Affinché un evento di ligazione abbia successo, l'enzima deve:
- Incontrare due estremità di DNA che diffondono liberamente.
- Catturare entrambe le molecole prima che si separino.
- Posizionare le estremità con la geometria corretta.
- Attivare i terminali del DNA.
- Catalizzare la formazione del legame fosfodiesterico.
- Rilasciare un prodotto unito senza introdurre variabilità di processo.
Le estremità coesive riducono il carico di diverse fasi perché le basi complementari aiutano a mantenere uniti i frammenti.
Le estremità piatte non rimangono associate. L'enzima deve svolgere autonomamente gran parte della funzione di posizionamento. Di conseguenza, la reazione è più lenta e maggiormente dipendente dalla concentrazione, dalla purezza e dall'attività intrinseca della ligasi.
Per questo la T4 DNA ligasi ad alta attività non è semplicemente una scelta conveniente del reagente. È una risposta alla cinetica intrinseca del substrato.
Il ruolo della T4 DNA ligasi ad alta attività
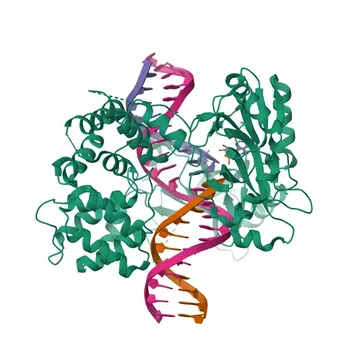
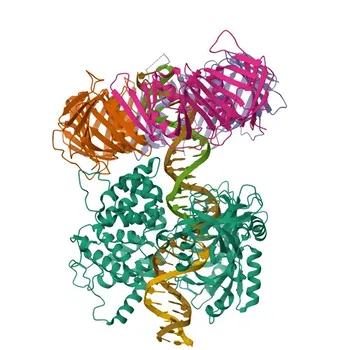
La T4 DNA ligasi catalizza l'unione dei frammenti di DNA formando un legame fosfodiesterico covalente tra un fosfato 5' e un gruppo ossidrile 3' adiacente.
Nei flussi di lavoro con estremità piatte, l'enzima deve contrastare un incontro debolmente favorevole tra i terminali del DNA. Un'elevata attività aumenta la probabilità che le collisioni transitorie si trasformino in eventi di ligazione produttivi.
Questo miglioramento comporta diverse conseguenze pratiche:
- Un'unione più completa entro un periodo di incubazione definito
- Un recupero migliore di molecole di libreria utilizzabili
- Una resa maggiore di cloni ricombinanti
- Una minore dipendenza da ripetute attività di risoluzione dei problemi
- Una maggiore uniformità tra campioni e lotti di produzione
La sola attività non è sufficiente. I flussi di lavoro diagnostici richiedono anche purezza e riproducibilità. Un enzima con una forte attività nominale ma prestazioni incoerenti tra i lotti può modificare l'efficienza di ligazione da un ciclo produttivo all'altro.
Per i prodotti regolamentati, questa variabilità non è un inconveniente secondario. Può diventare un problema documentale, un rischio per il rilascio o una minaccia diretta alla disponibilità del materiale di controllo.
Le estremità piatte nella preparazione di librerie NGS
La preparazione di librerie NGS mostra perché la ligazione di estremità piatte può essere tecnicamente difficile e strategicamente preziosa.
Il DNA frammentato viene spesso sottoposto a riparazione delle estremità. Lo scopo è produrre estremità con una struttura definita, che comunemente include terminali piatti e fosforilazione 5'. Una volta standardizzati i frammenti, è possibile ligare gli adattatori di sequenziamento su di essi.
A questo punto, ogni frammento perso modifica la libreria.
Collegamento uniforme degli adattatori
Una libreria diagnostica dovrebbe preservare la maggior parte possibile della complessità originale del campione. Se alcuni frammenti vengono ligati in modo efficiente mentre altri no, la libreria risultante potrebbe non rappresentare più la popolazione originale di DNA.
Le conseguenze possono includere:
- Una copertura genomica non uniforme
- Un aumento del bias di sequenza
- Una riduzione del rilevamento dei target a bassa abbondanza
- Un rischio maggiore di dropout allelico
- Una sensibilità inferiore vicino al limite di rilevazione del test
Una ligasi ad alta attività e alta purezza contribuisce ad aumentare il numero di frammenti che ricevono gli adattatori. Non elimina tutte le fonti di bias, ma rafforza una delle fasi più importanti del flusso di lavoro.
Il problema dei dimeri degli adattatori
La stessa chimica aspecifica che aiuta a collegare gli adattatori ai frammenti del campione può anche consentire agli adattatori di ligarsi tra loro.
I dimeri degli adattatori consumano la capacità di sequenziamento senza fornire informazioni significative sul campione. Possono inoltre complicare la purificazione e ridurre la proporzione di molecole di libreria produttive.
La soluzione non consiste semplicemente nell'aggiungere altro enzima. Un processo robusto deve bilanciare:
- La concentrazione degli adattatori
- La quantità di DNA iniziale
- I rapporti molari
- Il tempo di reazione
- L'attività dell'enzima
- La strategia di purificazione
- La rimozione dei prodotti indesiderati di piccole dimensioni
La ligasi è centrale, ma opera all'interno di un sistema. Le buone prestazioni della libreria derivano dal controllo dell'intero ambiente di reazione.
Costruzione di vettori con estremità piatte e controlli positivi
La difficoltà si manifesta in modo diverso quando si costruisce un controllo positivo ricombinante per un test diagnostico basato sulla PCR.
Un frammento di DNA sintetico può contenere la sequenza target necessaria per rappresentare un patogeno, una mutazione o un analita. Il frammento deve essere inserito in un vettore plasmidico in modo da poter essere amplificato, quantificato, stabilizzato e integrato in un processo di analisi controllato.
Una ligazione fallita non comporta soltanto lo spreco di una provetta di reazione. Può ritardare la verifica, prolungare i tempi di sviluppo e creare una carenza di materiale di controllo affidabile.
Massimizzare la resa dei ricombinanti corretti
Poiché le estremità piatte non forniscono un appaiamento direzionale, la reazione richiede spesso un'ottimizzazione deliberata.
Tra le considerazioni comuni figurano:
- Utilizzare un eccesso molare di inserto rispetto al vettore
- Mantenere una concentrazione di DNA adeguata
- Prolungare l'incubazione quando necessario
- Utilizzare una T4 DNA ligasi ad alta attività
- Prevenire l'autoligazione del vettore
- Verificare il corretto orientamento dell'inserto e il numero di copie
Un rapporto molare inserto:vettore superiore a 3:1 è spesso un buon punto di partenza, sebbene il rapporto ottimale dipenda dalla lunghezza del frammento, dalla concentrazione del vettore e dalla specifica strategia di costruzione.
L'obiettivo non è costringere ogni molecola a entrare in un prodotto. L'obiettivo è spostare la distribuzione delle probabilità verso il costrutto ricombinante desiderato.
Controllare i concatameri
Gli inserti con estremità piatte possono ligarsi tra loro prima di incontrare il vettore. Il risultato può essere un concatamero: una disposizione tandem di sequenze di inserto ripetute.
I concatameri sono particolarmente problematici quando il controllo positivo previsto richiede un numero di copie definito o una singola disposizione del target. Possono creare risultati di screening ambigui e complicare la caratterizzazione a valle.
La defosforilazione del vettore può ridurre l'autoligazione rimuovendo il fosfato 5' necessario per la formazione del legame. Agenti di affollamento come il PEG possono inoltre aumentare la concentrazione effettiva delle estremità del DNA e favorire incontri intermolecolari produttivi.
Questi interventi non modificano la chimica fondamentale. Modificano le reazioni che hanno maggiore probabilità di verificarsi.
Il compromesso: la potenza non elimina i vincoli
Una ligasi ad alta attività migliora l'unione delle estremità piatte, ma non trasforma le estremità piatte in estremità coesive.
Restano le limitazioni intrinseche:
| Fattore del flusso di lavoro | Sfida del DNA con estremità piatte | Risposta pratica |
|---|---|---|
| Riconoscimento molecolare | Non sono presenti sporgenze complementari che guidino l'appaiamento | Utilizzare una ligasi attiva e controllare attentamente la concentrazione del DNA |
| Velocità di reazione | Le collisioni produttive sono relativamente poco frequenti | Ottimizzare il tempo di incubazione e la quantità di enzima |
| Complessità della libreria | I frammenti non ligati possono andare persi | Proteggere la diversità iniziale mediante una ligazione efficiente degli adattatori |
| Dimeri degli adattatori | Gli adattatori possono unirsi tra loro | Ottimizzare i rapporti molari e la purificazione |
| Background del vettore | Il vettore può autoligarsi | Valutare la defosforilazione del vettore |
| Concatameri | Gli inserti possono unirsi in tandem | Regolare la concentrazione dell'inserto e sottoporre a screening i prodotti ricombinanti |
| Uniformità produttiva | La variabilità tra i lotti può modificare la resa | Utilizzare una fornitura di enzima con lotti validati e uniformi |
È qui che il giudizio tecnico diventa importante. Un reagente non può compensare indefinitamente una progettazione squilibrata della reazione.
Scegliere l'enzima giusto in base al risultato desiderato
La decisione sulla ligasi migliore deve partire dai requisiti del prodotto, non dalla descrizione del catalogo.
Per la preparazione di librerie NGS
Occorre dare priorità a:
- Elevata attività catalitica
- Elevata purezza
- Bassa contaminazione da nucleasi
- Compatibilità con il tampone e il sistema di adattatori
- Prestazioni uniformi tra i diversi tipi di campione
- Recupero affidabile di librerie complesse
In questo caso, l'enzima contribuisce direttamente alla rappresentatività del campione originale. Piccole differenze di efficienza possono diventare significative dopo l'amplificazione e il sequenziamento.
Per la costruzione di vettori
Occorre dare priorità a:
- Forti prestazioni nella ligazione di estremità piatte
- Compatibilità con il vettore e il metodo di preparazione dell'inserto
- Prestazioni riproducibili alla concentrazione di DNA prevista
- Supporto per lo screening e l'ottimizzazione
- Un protocollo che limiti l'autoligazione e la formazione di concatameri
Il risultato desiderato non è semplicemente "più ligazione". Sono necessarie più molecole assemblate correttamente.
Per i controlli positivi diagnostici regolamentati
Occorre dare priorità a:
- Rigorosa uniformità tra i lotti
- Specifiche di attività definite
- Formulazione stabile e prestazioni di conservazione affidabili
- Documentazione tecnica
- Continuità della fornitura
- Supporto applicativo durante lo sviluppo e il trasferimento del metodo
Un controllo positivo diventa parte della catena di evidenze del sistema diagnostico. Il suo processo produttivo merita quindi la stessa disciplina applicata alle altre materie prime critiche.
Dalla scelta del reagente all'affidabilità clinica
Il percorso che porta da un frammento di DNA a un risultato diagnostico comprende molte piccole transizioni.
Un frammento viene riparato. Un adattatore viene collegato. Un costrutto viene sottoposto a screening. Un controllo viene quantificato. Un kit viene trasferito alla produzione. Infine, un laboratorio utilizza quel kit per prendere una decisione riguardo a un paziente.
A ogni transizione, la variabilità può accumularsi.
La T4 DNA ligasi ad alta attività non risolve l'intero flusso di lavoro. Fa qualcosa di più preciso: rende più prevedibile una fase molecolare difficile. Questa prevedibilità favorisce una maggiore complessità della libreria, rese ricombinanti più elevate e una produzione più stabile dei controlli.
Per i produttori diagnostici, quindi, la domanda pratica va oltre la capacità di un enzima di ligare il DNA.
Le domande più appropriate sono:
- La sua attività può essere riprodotta da un lotto all'altro?
- La sua purezza è stata convalidata per l'applicazione prevista?
- Il fornitore comprende il flusso di lavoro nel suo complesso?
- Il supporto tecnico può proseguire dalle prime fasi di sviluppo fino alla produzione?
- La fornitura è sufficientemente affidabile per un prodotto regolamentato?
Perché è importante un partner integrato per le materie prime
Per i laboratori e gli istituti di ricerca, una ligasi può essere un componente tra molti.
Per i produttori diagnostici, fa parte di una catena più ampia che include la qualificazione delle materie prime, lo sviluppo del test, il trasferimento del processo, la documentazione, la risoluzione dei problemi e l'aumento di scala.
CamelBio offre ai produttori diagnostici, ai laboratori e agli istituti di ricerca un accesso completo a materie prime IVD, servizi tecnici e consulenza. Il suo supporto si estende dall'ideazione alla pratica clinica, aiutando i team a valutare gli enzimi molecolari nel contesto dell'intero flusso di lavoro diagnostico.
Questo contesto è importante perché la soluzione più efficace raramente consiste nel reagente più potente considerato isolatamente. È il reagente, il protocollo, il profilo qualitativo e la strategia di fornitura che funzionano insieme.
Considerazioni finali
Il DNA con estremità piatte è ingannevolmente minimale. La sua geometria uniforme elimina la guida molecolare che rende efficiente la ligazione delle estremità coesive.
Questa assenza crea una barriera cinetica.
La T4 DNA ligasi ad alta attività aiuta a superare la barriera catturando gli incontri transitori tra le molecole di DNA e trasformandoli in legami stabili. Nella preparazione di librerie NGS, ciò favorisce un ampio recupero dei frammenti e una riduzione del bias. Nella costruzione di vettori, migliora la probabilità di ottenere la molecola ricombinante desiderata, richiedendo al contempo un controllo rigoroso dei prodotti di background.
La lezione ingegneristica è semplice: quando un sistema è privo di un allineamento naturale, le prestazioni dipendono dalla qualità del meccanismo che lo fornisce.
Per enzimi affidabili, indicazioni applicative e supporto per le materie prime diagnostiche durante lo sviluppo e la produzione, inizia da Contatta i nostri esperti.
Prodotti correlati
- Anticorpo Monoclonale di Coniglio Anti-DNA Ligasi IV per WB, ELISA - P49917
- Anticorpo policlonale coniglio anti-DNA Ligase IV per WB, IHC-P, ELISA - P49917
- Anticorpo policlonale di coniglio anti-DNA ligasi III/LIG3 per WB, IP, ELISA - P49916
- Anticorpo Monoclonale Anti-DNA Ligasi I per WB, IHC-P, IF/ICC, ELISA - P18858
- Anticorpo policlonale coniglio Anti-DNA Ligasi III/LIG3 per WB, IHC-P, IF/ICC, ELISA - P49916